Vistas de página en total

sábado, 3 de marzo de 2018

Las plantas terrestres son más antiguas de lo que pensábamos

Se piensa que la aparición de las primeras plantas terrestres tuvo lugar en ambientes similares a este, una turbera colonizadora de un campo de lava en Islandia. A la derecha aparece Sylvia Pressel, coautora del artículo de PNAS. Foto: Paul Kenrick, Universidad de Bristol.

Un artículo publicado el pasado 20 de febrero en la revista PNAS, órgano de difusión de la Academia de Ciencias de Estados Unidos, ha revelado un dato muy interesante: Las plantas han estado en la tierra durante 500 millones de años, 80 millones de años más de lo que pensábamos
La conquista de la tierra firme por las plantas fue uno de los acontecimientos más importantes en la historia de la vida en la Tierra y sirvió para allanar el camino para los animales. Sin embargo, los datos disponibles hasta ahora hacían que los científicos se mostraran inseguros sobre cuándo se produjo ese proceso evolutivamente tan significativo. El nuevo estudio afirma tener la respuesta, y proporciona una edad mucho más temprana que la mayoría de las estimaciones anteriores.
Las plantas terrestres fosilizadas más antiguas que conocíamos datan de hace 427 millones de años. Esas plantas eran todas ellas leñosas, porque la posesión de madera es un atributo que ayuda al proceso de fosilización. Sin embargo, dado que las primeras colonizadoras no eran árboles gigantes provistos de troncos duros sino estirpes de pequeño tamaño relacionadas con las algas más evolucionadas y, por tanto, carentes de leño, es razonable pensar que las primeras plantas terrestres no se fosilizaron bien. Aunque se disponía de algunas plantas fósiles no lignificadas que podrían ser mucho más antiguas, el problema era datar con precisión su edad.
La alternativa al análisis clásico de los fósiles es usar "relojes moleculares", que usan diferencias en el ADN para mostrar cuánto tiempo ha pasado desde que se separaron las diferentes especies vivas. Se cree que un solo ancestro común colonizó la tierra, y las especies que vemos hoy se separaron relativamente poco después. Sin embargo, los relojes moleculares requieren una comprensión del árbol genealógico sobre el que se realiza el trabajo, y eso es algo sobre lo que existen discrepancias.

Figura. Hay cuatro categorías principales de plantas terrestres y siete teorías sobre el orden con el que se separaron, lo que dificulta datar el momento exacto. Las siete hipótesis se muestran en la figura. Moss: musgos; liverworts: hepaticas; hornworts: anthoceros. 
Los genetistas botánicos no han estado de acuerdo sobre las relaciones entre las cuatro categorías principales de las plantas terrestres (Hepaticophyta, Briophyta, Anthocerotophyta y Tracheophyta) y cuál de ellas se separó primero del tronco común. Hay siete hipótesis alternativas acerca de cómo se relacionan entre sí las cuatro (véase la Figura). En lugar de encelarse en la resolución de cuál de estas teorías es la correcta, los investigadores construyeron escalas de tiempo basadas en cada una de ellas, utilizando los registros fósiles considerados como calibradores temporales fiables. Descubrieron que cualquiera que sea el modelo que se use, la separación más antigua entre las plantas terrestres se produjo entre 515 y 469 millones de años atrás, es decir, entre 40-90 millones de años antes de las estimaciones basadas en fósiles.
Eso quiere decir que el antepasado de las plantas terrestres vivió en el período Cámbrico Medio, hace entre 509 y 497 millones de años, mientras que las primeras plantas vasculares (Tracheophyta) aparecieron en el tránsito entre el Ordovícico tardío y el Silúrico. Los resultados de este estudio también explicarían la existencia de huellas aparentemente dejadas por animales hace 450 millones de años, que resultaban difíciles de explicar dado que eran más antiguas que las primeras plantas conocidas hasta hoy. ©Manuel Peinado Lorca. @mpeinadolorca.

Gracias por las 280.000 lecturas


El blog acaba de superar las 280.000 visitas, una media de 3.500 visitas al mes desde que lo inicié en mayo de 2010. Muchas gracias a todos los que os tomáis la molestia de leerlo.
Haz clic sobre la imagen para ver las estadísticas.

Australianos y cervantinos


Australia. La estrella roja señala la posición aproximada de Cervantes.
Australia es el sexto país más grande del mundo y la isla más extensa. Es la única isla que es al mismo tiempo un continente, y el único continente que es también un país. Un país de casi 8 millones de km2 prácticamente vacío. Como el centro del país es un desierto, los 23 millones de australianos decidieron sabiamente concentrarse en ciudades costeras como Perth, Sidney, Canberra, Adelaida y Darwin, la única ciudad del norte que merece ese nombre y que, para hacernos una idea, dista 4.000 km por carretera (y pistas de tierra) de la capital Canberra. Naturalmente a ningún australiano en su sano juicio se le ocurre hacer un viaje en el que emplearía más de dos días conduciendo sin parar.
Uluru o Ayers Rock, el monolito que destaca en el paisaje continental australiano.
En el interior, si se exceptúa el monolito Ayers Rock (Uluru, si se desea usar el nombre que le dan los aborígenes), el paisaje es insólitamente llano, marrón, monótono, polvoriento y vacío. El vacío de Australia no es fácil de describir, pero algunas comparaciones demográficas pueden resultar de utilidad. En España, la densidad de población es de 92 hab/km2 y la del mundo en general es de 47. La media australiana es de 2,5, seis veces menor que la más despoblada de nuestras provincias, Cuenca. Por eso, cuando uno planea hacer una campaña botánica por Australia conviene ser cuidadoso con la planificación; las carreteras y pistas son pocas, los asentamientos humanos menos y las estaciones de servicio tan pocas y repartidas como para que uno, aunque acabe de repostar, conduzca con el corazón en vilo hasta la siguiente.
Cuando mapa en mano y Google Maps en el ordenador me puse a preparar la campaña que he llevado a cabo el pasado febrero (cuando el verano se prepara para dar paso al otoño austral) anoté un montón de pueblos con nombres pintorescos: Wee Waa, Poowong, Burrumbuyttock, Suggan Buggan, Boomahroomoonah, Waaia, Mullumbimby, Ewlyamartup, Jiggalong, Tittybong y …. Cervantes. Sí han leído bien, Cervantes. Que un pueblo perdido en la costa del Índico australiano, unos 300 kilómetros al norte de Perth, lleve el apellido del alcalaíno es algo sorprendente. Como entre mis objetivos estaba recorrer el desierto de Pinnacles, y Cervantes era el pueblo más cercano con un motel, me propuse alojarme allí y curiosear un poco.
La enorme veleta situada en la entrada de Cervantes muestra las siluetas de Sancho Panza, don Quijote y un velero de dos palos.
Como en la mayoría de los pueblos australianos, Cervantes es dominio de casas unifamiliares con jardín y mecedoras en los porches, si bien en torno a la céntrica Seville Street se alinean la gasolinera, el motel (este situado en Aragon Street), un centro cívico-cultural (con una biblioteca en la que no hay un solo ejemplar de El Ingenioso Hidalgo) y algunos otros comercios como el café Don Quixote, en cuyo interior un mural de dudoso gusto presenta a don Alonso Quijano entre los pináculos del desierto vecino. Pero alejemos cualquier pensamiento acerca de las aficiones literarias de los poco más de 500 cervantinos que viven dedicados a la pesca de la langosta y que eligieron en 1962 el nombre de la ciudad por una razón más prosaica pero no menos interesante.
En la entrada del pueblo hay una gigantesca veleta que ofrece la clave del topónimo y un gran tríptico que ofrece información sobre la villa, incluyendo un plano callejero repleto de nombres de ciudades (Gerona, Tarragona, Barcelona, Seville (sic), Granada, entre otras) y personajes españoles como Picasso o Balboa. Los curiosos pueden hacer clic aquí y comprobar lo que estoy diciendo. Comprueben también en el centro del meritado tríptico que los lugareños no tienen dificultad alguna para retener los teléfonos de emergencia de ambulancia, policía y bomberos (000) y, sin van a viajar por Australia, no dejen de anotar el teléfono de ámbito nacional 13 11 26, que puede serle de gran utilidad por la información sobre curas de urgencia y antídotos contra venenos que ofrece. Y es que en Cervantes, como en toda Australia, hay decenas de criaturas venenosas dispuestas a matarte. 
Me alojo en el Cervantes Pinnacles Motel. Es sábado por la tarde y en el bar del establecimiento los parroquianos engullen animadamente latas de cerveza. Alertados por mi acento guiri, se sorprenden cuando les digo que vengo de la ciudad natal de Cervantes (pronunciado «servenris», con erre suave, en inglés). Según me cuentan hace años, en 2002, cree recordar alguno menos achispado que sus colegas, un equipo de Telemadrid rodó algo por aquí. Es probable que nadie en el pueblo haya leído nada de don Miguel, pero todos se muestran satisfechos de vivir en un pueblo cuyo nombre es el de un escritor que –me dicen- es tan importante como Shakespeare. Les doy la razón y brindamos por España y Australia.
Entre trago y trago de Feral, la excelente cerveza de Perth, me cuentan el origen del nombre de su pueblo, una historia que completo más tarde con la lectura de Unfinished Voyages: Western Australian Shipwrecks 1622-1850 (Viajes inacabados: naufragios de Australia Occidental 1622-1850) un libro del arqueólogo marino Graeme Henderson, que detalla historias de los innumerables barcos comerciales, balleneros, o cargados de emigrantes, convictos, esclavos y piratas, que tuvieron encuentros fatales con la costa de Australia al norte de Perth. El viento y la vastedad oceánica inspiran un sinfín de monumentos conmemorativos en esta costa occidental australiana con debilidad por los naufragios, como certifica el panel situado en Thirsty Point, que informa sobre los cuatro barcos destrozados por los bajíos de arenas coralinas que espumean en el horizonte.
La apacible localidad en la que me encuentro lleva el nombre de un ballenero estadounidense de 28 metros de eslora y una tripulación de nueve hombres que naufragó frente a sus costas a mediados del siglo XIX. El Cervantes fue un barco sin suerte. Construido en 1836 en Bathe, Maine, realizó su primer viaje a la caza de ballenas en el oeste de Australia a finales de 1841. El 23 de junio de 1843 zarpó desde New London, Connecticut, para cazar cachalotes en Australia Occidental. El barco pasó algún tiempo en la costa australiana, en el área de Geographe Bay durante enero y febrero de 1844. Estaba anclado invernando en Jurien Bay, la desolada bahía en la que hoy está Cervantes, cuando fue sorprendido por una galerna el 29 de junio de ese año. Antes de que el buque pudiera navegar y capear el temporal en el mar, la marejada lo hizo encallar en un banco de arena. La tripulación logró alcanzar tierra y tres miembros llegaron a Perth el 6 de julio para informar de la pérdida. El 9 de julio llegaron el capitán, Sylvanus Gibson y otros tripulantes. Aunque el capitán tenía la intención de reflotar el buque, su quilla estaba muy dañada y resultaba imposible hacerlo navegar hasta el astillero más cercano, así que Gibson decidió vender el navío.
La subasta del Cervantes y de sus contenidos, incluyendo el equipo de caza, reportó a su capitán y armador 155 libras. El valioso cronómetro del barco se vendió por separado por 23 libras. Los marineros enviados por el comprador, el señor Wicksteed, informaron que el pecio aún estaba en pie cuando rescataron el equipo en agosto de ese año. De hecho, un tal Joshua William Gregory dijo que aún era visible sobre el agua cuando inspeccionó la costa en la goleta Thetis en 1847. Con el paso del tiempo, la población que se asentó en la costa para dedicarse a la pesca de langostas acabó por adoptar el nombre del ballenero que fue a morir a sus aguas, sin saber aún que era nada menos que el apellido de uno de los próceres de la literatura universal.
En Cervantes, como en el resto de Australia, todo cierra a las cinco, menos el bar, que lo hace sobre las nueve. Llega entonces el momento de gozar de otro de los encantos del lugar: sentarse en el porche del motel, sintiéndote en medio de la nada, cuando cae la noche y se contempla la Cruz del Sur, sin «skyline» urbano que interrumpa la visión. ©Manuel Peinado Lorca.

jueves, 1 de marzo de 2018

El Ejército alemán y el pico del petróleo


Creo que la experiencia tecnológica de la ingeniería alemana indica que los germanos tienen una gran tendencia a la precisión. En 2010, el ejército alemán elaboró un estudio sobre la importancia estratégica del petróleo (Armed Forces, Capabilities and Technologies in the 21st Century. Environmental Dimensions of Security. Sub-study 1: PEAK OIL. Security policy implications of scarce resources). Estos son algunos extractos de la introducción de ese estudio. Piensa lo que quieras, pero si ignoras lo que dice el documento, lo haces esto bajo tu propia responsabilidad.
«Sin embargo, es un hecho que el petróleo es finito y que hay un pico del petróleo. Dado que este estudio se centra principalmente en la comprensión de las relaciones causa-efecto después de una situación de pico de petróleo, no es necesario especificar un punto preciso en el tiempo. Algunas instituciones afirman que el pico de petróleo ocurrirá alrededor de 2010. Dependiendo del desarrollo de factores relevantes a nivel mundial, no podemos descartar que el pico de petróleo pueda tener implicaciones serias de política de seguridad dentro del período de revisión de la perspectiva de investigación de 30 años elegida para la Serie SFT [...] Este estudio tiene como objetivo sensibilizar sobre las posibles consecuencias, los riesgos y los efectos en cascada de la política de seguridad que pueden derivarse al sobrepasar el pico del petróleo [..]. Hoy en día, aproximadamente el 90% de todos los productos fabricados industrialmente dependen de la disponibilidad de petróleo [...] El 90% de todas las importaciones alemanas de petróleo provienen de países que alcanzaron o ya han excedido sus picos nacionales durante el período de revisión del estudio ...».
Para los más interesados os dejo el enlace al documento: https://permaculturenews.org/files/Peak%20Oil_Study%20EN.pdf

viernes, 2 de febrero de 2018

Una rara especie de planta parásita liliputiense

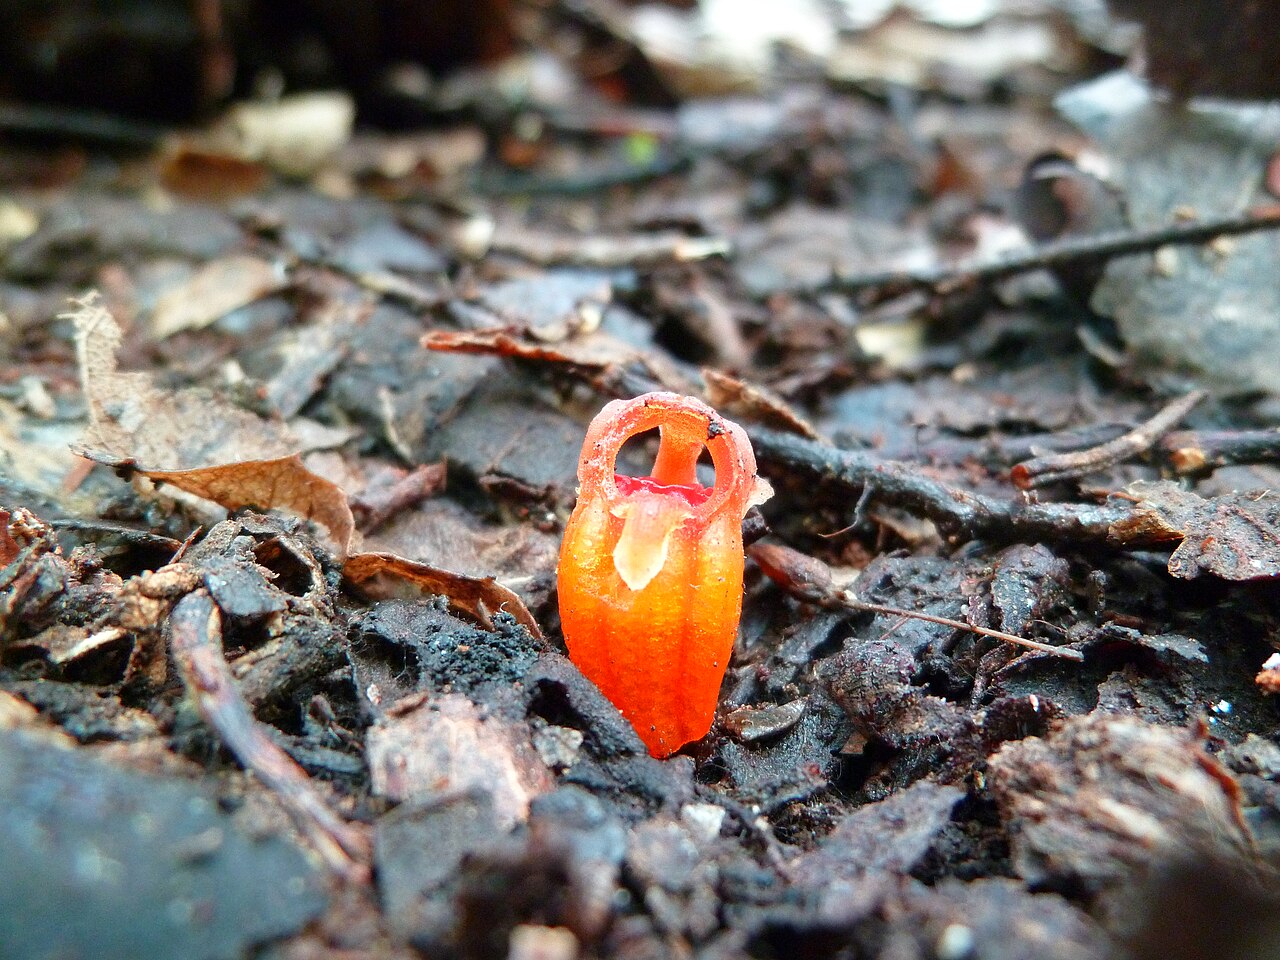
Flor de Thismia rodwayi. Foto.
Por lo general, y tal como nos enseñaron en la escuela, las plantas con flores (angiospermas) son capaces de alimentarse por sí solas mediante la fotosíntesis, es decir, mediante la captación de los fotones lumínicos por un pigmento especializado, la clorofila, cuyo color verde tiñe las partes vegetativas (tallos y hojas) de las plantas que la poseen. Toda regla, y más en la naturaleza, tiene sus excepciones y así, aunque la mayoría de las angiospermas son autótrofas, es decir, capaces de realizar la fotosíntesis, unos cientos de ellas son heterótrofas, lo que quiere decir que necesitan obtener sus nutrientes desde otras fuentes orgánicas.
Hasta hace pocos años se creía, de un modo erróneo, que las plantas que no realizan la fotosíntesis conseguían sus nutrientes directamente de la materia orgánica de una manera saprofítica, similar a la que utilizan los hongos que descomponen lo restos de otros organismos. Tales plantas, por lo tanto, fueron llamadas «saprófitas». Ahora se sabe que esas plantas no son capaces de la absorción y digestión directa de la materia orgánica, y que para conseguir el alimento deben recurrir al parasitismo. El parasitismo puede ser directo (cuando parasitan directamente a otras plantas) o indirecto. En este caso, que practican las llamadas micoheterótrofas (micos significa hongo en griego), las plantas se valen de los hongos, a los que parasitan para obtener sus nutrientes, mientras que estos, a su vez, obtienen los suyos parasitando otras plantas o descomponiendo sus restos.
Sarcodes sanguinea. Foto
La relación entre la planta y sus socios fúngicos se establece entre las raíces de la planta y el micelio del hongo. Las micoheterótrofas, por tanto, se pueden considerar como epiparásitas, puesto que toman la energía de los hongos, los cuales, a su vez, la consiguen de otras plantas vasculares. De hecho, muchos micoheterótrofos se encuentran en un entramado micorrícico, en el que las plantas utilizan las micorrizas del hongo para el intercambio de dióxido de carbono y nutrientes. En estos sistemas, los micoheterótrofos juegan el papel de «explotadores micorrizales», tomando los nutrientes de las micorrizas comunes, pero sin dar nada en contrapartida.
Existen alrededor de 400 especies de plantas micoheterótrofas obligadas, que se distribuyen en cerca de 90 géneros, y casi 20.000 especies micoheterótrofas facultativas, o sea, que dependen de un hongo para sobrevivir al menos en los estados iniciales de crecimiento, como por ejemplo las orquídeas. Casi todos los años se describen nuevas especies micoheterótrofas, sobre todo en los trópicos, porque en las latitudes extratropicales –cuya flora se conoce mejor- parece que las plantas que parasitan a hongos son conocidas desde muy antiguo. Entre ellas se cuentan los arbustos ericáceos de los bosques boreales pertenecientes a la tribu Pyroleae, como Chimaphila umbellata, Orthilia secunda, Pyrola chlorantha, P. rotundifolia y Sarcodes sanguinea.
El pasado mes de enero, en la revista neozelandesa Phytotaxa, dos botánicos tailandeses han descrito una nueva especie de planta micoheterotrófica, Thismia thaithongiana, cuyo hábitat se separa mucho del habitual en otras especies de la familia Thismiaceae a la que pertenecen. Las tismiáceas son una familia de plantas monocotiledóneas, pequeñas y raras, tropicales y subtropicales de todo el mundo. Son hierbas sin clorofila, cuyos tallos subterráneos pasan desapercibidos pero que se reconocen durante la antesis por sus características flores.
Thismia thaithongiana. A, planta en su ambiente natural, en las calizas de Doi Hua Mot, Umphang, Tailandia. B, plantas con sus tallos subterráneos. C, flor inmadura. D, vista cenital de la flor. E, F, vistas laterales de las flores. G, sección longitudinal de la flor. Foto. 
Las flores son usualmente solitarias y terminales, sin diferenciación entre pétalos y sépalos, como es habitual entre las monocotiledóneas, cuyas piezas florales se denominan tépalos. En las tismiáceas, los tépalos externos son muchas veces bastante diferentes de los internos; hay un anillo rodeando la amplia garganta; los estambres forman un cono en el centro de la flor, y el ovario es ínfero. Las flores tienen una textura blanda, gelatinosa, y, en general, recuerdan a pequeños hongos, como sucede con T. thaithongiana que aparece en la composición fotográfica de arriba, que se explica mejor con la iconografía de la lámina y con la descripción con las que finalizo este artículo.
El género Thismia, con más de 60 especies descritas, es el más amplio de la familia tismiáceas, y está ampliamente distribuido en las regiones tropicales y subtropicales del sureste de Asia, sobre todo en la península malaya, Sumatra, Java, Borneo, Tailandia y Vietnam. Los miembros del género son pequeñas hierbas micoheterotróficas que por lo general crecen sobre hojarasca en descomposición a la sombra de bosques tropicales húmedos. Lo que distingue a T. thaithongiana del resto sus congéneres es que vive en bosques abiertos y secos, directamente sobre sustratos calcáreos, aunque su floración está directamente ligada a las lluvias tardías de septiembre-octubre que mantienen húmedo el horizonte superior del suelo. ©Manuel Peinado Lorca. @mpeinadolorca.
Thismia thaithongiana. A, B, plantas con flores. C, vista cenital de la flor. D, sección longitudinal de la flor. E, vista interior (adaxial) de tres estambres péndulos. F, stigma y estilo. Lámina dibujada a partir del holótipo de la especie. Lámina.

Descripción de Thismia thaithongiana: 
Hierbas terrestres, sin clorofila, micoheterotróficas. Tallos subterráneos agrupados, horizontales, vermiformes, ramificados, de hasta 1,2 mm de diámetro, blanquecinos cuando son jóvenes, de color pardo cuando están viejas. Tallos aéreos erectos, de menos de 2 mm de largo. Hojas glabras, blanquecinas, escamosas, de estrechamente triangulares a ovadas, 1,5-5.0 × 1,2-3.5 mm, ápice de obtuso a agudo; las hojas más grandes se sitúan justo debajo de la flor. Entre dos y tres brácteas involucrales, blancas, similares a las hojas superiores. Flores solitarias o apareadas, a veces varias agrupadas en un rizoma, pubescentes, de color verdeazulado en el ápice, blanquecinas en la base. Perianto actinomórfico con 6 tépalos fusionados para formar un tubo periántico a modo de capucha mitriforme. Tubo periántico urceolado, estrechado justo encima del ovario, más ancho en el tercio superior, blanquecino, a veces con 12 rayas verticales verdeazuladas en la parte superior; superficie interna en cuyo ápice hay un anillo ancho, prominente, verdeazulado. Tres tépalos exteriores verdeazulados, triangulares, 1,5-3× 3-4.5 de ancho en la base, terminados por apéndices en forma de cuerno; cada apéndice de 2-4.5 mm de largo, pubescente. Tépalos internos 3, verdeazulados, connados en la parte superior en forma de mitra, con un apéndice en forma de cuerno pubescente que se desarrolla desde la costilla central de la superficie externa de cada uno, cuya longitud es de 2-4 mm; la mitra presenta tres aberturas laterales, de 2,5-4,5 mm de diámetro. Anillo interior verdeazulado, de 2,5-3,5 mm de diámetro, glabro. Estambres 6, péndulos debajo de la boca del anillo, verdeazulados en la base, blanco-cremoso a rosado en el ápice; filamentos glabros, libres, ca. 1 mm de largo; estambres lateralmente connatos, formando un tubo con sus anteras; estambres individuales espatulados, con 4 tecas (dehiscencia abaxial, hacia la superficie interna del tubo periántico. Ovario ínfero, en forma de copa, 3,0-4,5 mm de largo, pubescente, unilocular, placentas 3; estilo ca. 1 mm de longitud; estigma trilobulado, ca. 1,2 mm de largo, blanco cremoso, superficie casi entera; lóbulos de estigmas triangulares o lanceolados, peludos. Fruto maduro y semillas no observadas. Traducida de la descripción original.

domingo, 21 de enero de 2018

Las orquídeas que fascinaron a Darwin

Flores masculinas de Catasetum osculatum. Foto
En general, las orquídeas presentan flores perfectas, lo que quiere decir que contienen órganos masculinos y femeninos. Sin embargo, en la naturaleza no hay excepciones a la regla y en una familia tan grande como la de las orquídeas, las excepciones siempre están a la vuelta de la esquina. Tomemos como ejemplo a las orquídeas del género Catasetum. Las más de 160 especies descritas de este género presentan flores unisexuales, bien masculinas, bien femeninas, pero nunca hermafroditas. Además, la morfología floral de unas y otras es tan distinta que algunas especies se describieron como distintas según su sexo.
Flores femeninas de Catasetum osculatum. Foto.
Fue Charles Darwin el primero en descubrir que las plantas de diferentes sexos pertenecían a la misma especie por más que algunos botánicos las hubieran descrito como especies diferentes. El género Catasetum cautivó a Darwin, quien consiguió hacerse con una excelente colección para estudiar gracias a los ejemplares que le regalaron amigos y corresponsales de todo el mundo. Darwin no solo resolvió la cuestión nomenclatural, sino que también describió el singular mecanismo de polinización de estas orquídeas tropicales. Los detalles de este proceso son tan extraños que los hallazgos de Darwin fueron ridiculizados por algunos científicos de la época. Pero una vez más, Darwin tenía razón.
Si tener plantas individuales masculinas y femeninas no era lo suficientemente extraño para estas orquídeas, el mecanismo por el cual se logra la polinización es literalmente explosivo. Las Catasetum son polinizadas por grandes abejas del género Euglossine. Atraídas por el dulce aroma de las flores masculinas, las abejas se posan en el labelo y comienzan a explorar la flor. Sobre el labelo hay dos estructuras semejantes a pelos. Cuando una abeja entra en contacto con estos pelos, la flor dispara hacia abajo una estructura, la polinia, que contiene lo sacos de polen (Véalo en este vídeo). Una almohadilla adhesiva en la base de la polinia garantiza que una vez que golpea a la abeja, se adhiera firmemente a ella.
Flores femeninas de C. longifolium. Foto
Las abejas pronto se dan cuenta de que las flores masculinas son lugares inhóspitos de los que no obtienen nada positivo, por lo que parten en busca de otras flores en la que libar sin ser golpeadas por unos objetos pegajosos. Posiblemente sea esa la causa de que las flores de sexos diferentes parezcan tan distintas entre sí. Cuando las abejas visitan las flores femeninas, los sacos de polen que llevan en su dorso se deslizan en un surco perfecto que existe en la entrada del ovario de las flores femeninas y así se logra la polinización.
La singularidad de esta estrategia reproductiva ha hecho que las orquídeas Catasetum sean el centro de atención de botánicos y horticultores quienes se preguntaban cómo se determina su sexo ¿Es un sexo genéticamente determinado o hay ciertos factores ambientales que lo condicionan? Como resultado de múltiples investigaciones, parece ser que la disponibilidad de luz puede ser una de las señales más importantes para la determinación sexual en Catasetum.
En un artículo publicado en 1991, Jess K. Zimmerman describió que había patrones en la ratio de sexos para al menos una especie de Catasetum. Las plantas femeninas se encontraban con mayor frecuencia en los bosques más jóvenes, mientras que las proporciones se aproximaban a 1:1 en los bosques más viejos. Lo que los investigadores encontraron fue que las plantas son más propensas a producir flores femeninas bajo doseles abiertos y flores masculinas bajo doseles cerrados. Es posible que, debido a que la producción de semillas es un esfuerzo muy costoso para las plantas, los individuos con acceso a más luz sean más propensos a presentar flores femeninas.
Además de sus extraños hábitos reproductores, la ecología de estas plantas también es fascinante. Nativas de los trópicos del Nuevo Mundo, las Catasetum viven como epífitas en las ramas y los troncos de los árboles. Vivir en el dosel arbóreo puede ser bastante estresante y las orquídeas han evolucionado para resolver los problemas ecológicos. Para empezar, son caducifolias. La mayoría de los hábitats en los que aparecen experimentan una estación seca. A medida que las lluvias desaparecen, las plantas pierden las hojas y perviven gracias a un denso grupo de pseudobulbos verdes. Estas estructuras bulbosas sirven como almacenes de energía y agua que impulsarán el crecimiento tan pronto como vuelvan las lluvias.
C. silvestre creciendo como epífito. Foto
El dosel también puede ser bajo en nutrientes vitales como el nitrógeno y el fósforo. Al igual que todas las orquídeas, las Catasetum son micorrízicas, es decir, cuentan con una asociación íntima con hongos micorrizógenos que les suministran esos nutrientes. Tales asociaciones son vitales para la germinación y el crecimiento. Sin embargo, los hongos con los que se asocian se alimentan de madera muerta, que es baja en nitrógeno. Eso ha llevado a otra relación más complicada y altamente especializada que se conoce en al menos algunos miembros de este género de orquídeas.
Las Catasetum maduras se encuentran frecuentemente creciendo sobre nidos de hormigas arborícolas. Las que no lo hacen, a menudo albergan colonias de hormigas dentro de sus pseudobulbos ahuecados. Esta asociación con hormigas cumple una doble función. Al instalarse dentro de la orquídea o alrededor de sus raíces, las hormigas proporcionan a la planta una fuente vital de nitrógeno en forma de heces y otros productos de desecho. Al mismo tiempo, las hormigas atacarán con fiereza a cualquier cosa que pueda amenazar su nido. Al hacerlo, mantienen a raya a herbívoros potenciales.
Contemplar una Catasetum en floración es algo extraordinario. Son maravillas de la evolución y una prueba viviente de que parece que no hay límites para la capacidad de las orquídeas para sobrevivir. Afortunadamente para la mayoría de nosotros, no hay que viajar a la jungla y escalar un árbol para ver de cerca una de estas orquídeas. La facilidad para cultivarlas ha hecho que la mayoría de los jardines botánicos disfruten al menos de una especie o dos de este género. Si encuentra una Catasetum, tómese tiempo para admirarla en todo su esplendor. Se sentirá feliz de haberlo hecho. ©Manuel Peinado Lorca. @mpeinadolorca.

viernes, 5 de enero de 2018

Fracking US: Sálvese quien pueda

BHP Billiton: la empresa minera más grande del mundo ha puesto en venta sus activos de fracking.
Plataforma de fracking de BHP Billiton en Eagle Ford, Texas. Foto.
BHP Billiton, la compañía minera más grande del mundo, ha decidido abandonar totalmente la industria de fracking. El pasado mes de diciembre, BHP Billiton solicitó a cuatro bancos de inversión que pusiesen a la venta los activos por valor de 50.000 millones de dólares que la compañía tiene invertidos en la extracción de petróleo y gas de lutitas en Estados Unidos. Desgraciadamente para BHP, la compañía tendrá suerte si logra venderlos por 10.000 millones.
Algo debe haber cambiado recientemente, porque BHP Billiton había anunciado en octubre de 2016 que estaba considerando vender sus activos de esquisto en los próximos dos años. Sin embargo, decidió deshacerse de ellos a finales de 2017. Según declaró Steve Pastor, responsable de petróleos de BHP Billiton, en un artículo publicado en octubre de 2016 en el Financial Times, la compañía apostaba a tope por sus activos en la industria del fracking: “la compañía sigue comprometida con sus activos de lutitas, que [cree] que pueden superar los rendimientos de sus campos petrolíferos convencionales y cubrir la brecha de suministro de crudo causada por la sequía de inversiones en toda la industria provocada por el colapso de los precios del petróleo desde mediados de 2014 […] Nos dimos cuenta rápidamente de que no obtendríamos beneficios inmediatos [de la inversión en activos de fracking], pero nos habíamos hecho con unos activos fantásticos”, decía Pastor en aquel artículo.
Figura 1. Fuente.
¡Cómo han cambiado las cosas de un año a esta parte! BHP Billiton quiere ahora deshacerse como sea de aquellos activos fantásticos tan pronto como pueda. Cuando en 2011 BHP Billiton estaba comprando a manos llenas activos en la industria del fracking, la compañía pensaba que había comprado algunas de las mejores "joyas energéticas" que podía ofrecer Estados Unidos. De acuerdo con la presentación sobre los campos de lutitas que J. Michael Yeager, entonces director ejecutivo de la división de petróleos de la compañía, hizo llegar en 2011 a sus accionistas, la compañía tenía grandes planes (Figura 1), unos planes que había presentado en un vistoso folleto en que el propio Yeager ensalzaba las innumerables virtudes de lo que ahora es basura financiera..
Según Yeager, la compañía había adquirido un recurso de primera a nivel mundial, “clave para BHP Billiton, de larga duración, bajo coste y con un importante desarrollo futuro". En la trastienda de esas cuatro afirmaciones (recursos de nivel mundial, larga vida, bajo coste e importante desarrollo futuro), solo había una certeza: BHP invirtió ese año 15.000 millones de dólares para desarrollar, perforar y extraer petróleo y gas de lutitas. La cartera de lutitas de la compañía en noviembre de 2011 se muestra en la Figura 2.
Figura 2. Fuente.

Como puede verse en la parte inferior de esa tabla, que era la diapositiva 45 de la presentación de Yeager, la inversión presentaba "Múltiples oportunidades de optimización en 30 años". ¡Qué rápido han pasado esos 30 años! Han transcurrido solo seis y la compañía se está preparando para liquidar sus activos lo más rápido que pueda y esperando tener la suerte de que otros incautos sean lo suficientemente estúpidos como para comprarlos.
Veamos ahora la diapositiva 47 de la presentación (Figura 3). Según el director ejecutivo de petróleos, "las lutitas ofrecen la capacidad de aumentar rápidamente el crecimiento y de mantener las ganancias a largo plazo". Como puede verse, el rendimiento energético de las lutitas prometía recuperar capital en cuestión de meses, no más de cinco años, como había ocurrido con los proyectos convencionales de aguas profundas de BHP. Desgraciadamente para quienes invirtieron, BHP y la abrumadora mayoría de las compañías que pusieron su capital en las lutitas no ganaron ni un dólar. Una cosa era verdad: las compañías podían aumentar rápidamente la producción de petróleo y gas de lutitas, pero a expensas de los inversores.
Figura 3. Fuente.
Además de los 15.000 millones que BHP gastó para producir con pérdidas recursos de gas y petróleo de lutitas, también sufrió pérdidas de 12.000 millones en 2015 y 2016 por la depreciación de sus activos de esquisto supuestamente de "alta calidad". Ya pueden imaginarse por qué el CEO de BHP está loco por deshacerse de sus activos (que han resultado ser pasivos) de lutitas, que han sido de largo una de las mayores sangrías de capital en el balance histórico de la compañía.
Como ya indiqué en un artículo anterior, ni la gente en general ni los inversores en particular tienen una idea cabal del esquema de estafa piramidal del “prodigioso milagro” del fracking estadounidense, que está comprando un poco más de tiempo para seguir pidiendo dinero prestado que les permita pagar los intereses de una deuda cada vez más insostenible que afecta a toda la industria energética del país. Mientras que la economía de los Estados Unidos parece navegar a toda popa, pocos se dan cuenta de que su industria doméstica de las lutitas está a unos pocos años de desintegrarse.
Cuando finalmente la industria energética de Estados Unidos se arruine, la mayoría de los estadounidenses se verán sumidos en una depresión económica de la que nunca antes habían sido testigos. Aquellos que fueron lo suficientemente sabios como para invertir en lingotes de oro y plata disfrutarán de mejores beneficios que quienes se jugaron todas sus fichas en el casino de Wall Street. ©Manuel Peinado Lorca. @mpeinadolorca.